Диплом: Біохімія трансгенної картоплі в умовах України
Диплом: Біохімія трансгенної картоплі в умовах України
МІНІСТЕРСТВО АГРАРНОЇ ПОЛІТИКИ УКРАЇНИ
СУМСЬКИЙ ДЕРЖАВНИЙ АГРАРНИЙ УНІВЕРСИТЕТ
АГРОНОМІЧНИЙ ФАКУЛЬТЕТ Кафедра захисту рослин
Завідувач кафедрою_____________________
А.К.Мішньов
ДИПЛОМНА РОБОТА
на тему: «Біохімія трансгенної картоплі в умовах
України»
Для одержання кваліфікації спеціаліста
за спеціальністю 7.130105 – Захист рослин»
Виконавець _________________ (Загорулько О.)
Науковий керівник ______________ (Чіванов В.Д.)
Консультант з екологічної
експертизи ________________ (Жатова Г.О.)
Консультант з питань
техніки безпеки _________________ (Шандиба О.Б.)
Суми - 2001
ЗМІСТ
Стор.
Вступ
..................................................................................................................
1. Огляд літератури........................
1.1. Загальна характеристика фізико-хімічних властивостей глікоалкалоїдів
рослин родини Solanaceae............................................
1.1.1. Глікоалкалоїди рослин картоплі та їх будова...........
1.1.2. Глікоалкалоїди як токсичні сполуки..............
1.1.3. Роль глікоалкалоїдів в явищі імунітета до бактеріальних,
грибкових захворювань і шкідників та їх значення в селекції нових сортів
картоплі..........................
2. Природні умови
господарства.................................................................
.....
3. Методика проведення
досліджень..............................................................
4. Результати
досліджень...................................................................
..............
5. Охорона
праці........................................................................
.......................
6. Охорона навколишнього
середовища.......................................................
Висновки
..........................................................................................................
Список використаної літератури
...............................................................
ВСТУП
Підвищений “тиск” на організм людини ксенобіотичних сполук природного та
штучного походження обумовлює необхідність поглибленого вивчення таких сполук,
і в першу тих із них, котрі входять до складу найбільш поширених харчових
продуктів, зокрема картоплі. Глікоалкалоїди картоплі являють собою групу
вторинних метаболітів, яким притаманні найрізномантніші види біологічної
активності [ ]. Так, дослідами in vitro доведена здатність цих сполук
спричинювати хромосомні аберації, порушувати цілісність ліпосом та природніх
біомембран тощо [ ]. Останнє свідчить на користь того, що глікоалкалоїдам
притаманна потенційна мутагенна і, можливо, канцерогенна активність [ ].
Виходячи з наведеного, цілком природньою є підвищена зацікавленість в
дослідженні глікоалкалоїдів з боку фахівців в галузях медичної токсикології і
генетики людини, тим більше, що в останні роки на світовий ринок виходять нові
сорти продовольчої картоплі, отриманої як шляхом “класичної” селекції за участі
дикоростучих видів роду Solanum [ ], так і за допомогою генетичної інженерії
(New LeafÒ, Monsanto, США). Обидва підходи не виключають
біосинтезу в тканинах рослин картоплі, зокрема бульбах, окрім характерних для
культурної картоплі глікоалкалоїдів a-Соланіну та a-Чаконіну “мінорних”
глікоалкалоїдів (солакаулін, соласолін, соламаргін, деміссін, томатін, лептін І
і ІІ, лептінін-І і ІІ тощо), які ведуть походження з дикоростучих попередників,
або синтезуються de novo [ ]. Останнім притаманні токсикологічні
характеристики, відмінні від добре відомих аналогічних показників a-Соланіну та
a-Чаконіну. Якщо прийняти до уваги встановлений факт щодо синергетичного
багаторазового підсилення біологічної активності суміші двох різних за хімічною
структурою глікоалкалоїдів [ ], то стає цілком обгрунтованою необхідність
досліджень кількісних та якісних показників глікоалкалоїдів продовольчої
картоплі паралельно з селекцією та молекулярною інженерією, успішність яких
залежить від наявності нових високочутливих методів фізико-хімічного аналізу.
Складність аналізу сумарної фракції глікоалкалоїдів з рослин картоплі
пов’язана, зокрема з тим, що субфракція “мінорних” глікоалкалоїдів не перевищує
за масою 0,5-5% [ ].
Останнім часом в аналізі біомолекул набули широкого розповсюдження методи
м’якоіонізаційної мас-спектрометрії, зокрема плазмено-десорбційна
мас-спектрометрія (PDMS). Зважаючи на це, нами зроблена спроба проаналізувати
фракцію глікоалкалоїдів бульб та квітів картоплі трансгенних сортів NewLeaf 6
Russet Burbank та NewLeaf 6 Atlantic за допомогою PDMS мас-спектрометрії.
Таким чином, метою наших досліджень був докладний аналіз глікоалкалоїдів бульб
та квітів картоплі трансгенних сортів NewLeaf 6 Russet Burbank та NewLeaf 6
Atlantic новітнім мас-спектрометричним методам.
ОГЛЯД ЛІТЕРАТУРИ
1.1. Загальна характеристика фізико-хімічних властивостей
глікоалкалоїдів рослин родини Solanaceaе
Рослини картоплi культурних та диких видів мiстять серед численних органiчних
сполук групи вторинних метаболітів глiкоалкалоїди [ ], найважливiшими з
яких є a-соланiн, a-чаконiн, деміссин, лептіни I,II,III, соламарін,
коммерсонін [ ]. Фiзiологiчнi функцii глiкоалкалоїдiв пов'язанi з явищем
стiйкостi рослин картоплі проти фiтопатогенiв i шкiдникiв [ ]. Крiм того,
глiкоалкалоїди беруть безпосередню участь в бiохiмiчних процесах, які
притаманні тканинам листкiв, пагонiв, квiток, бульб рослин картоплi
(цвiтiння, видова сумiснiсть, утворення насiння); обумовлюють разом з iншими
вторинними метаболiтами смаковi якостi та придатнiсть картоплi для переробки
[ ], а також мають певне значення як токсичні, ембріотропні і канцерогеннi
сполуки природнього походження [ ]. Зважаючи на це, багато перспективних
за врожайнiстю та iншими господарсько-корисними якостями сортiв картоплi не
були рекомендованi для широкого використання саме завдяки пiдвищеному вмiсту
глiкоалкалоїдiв [ ]. На думку вiтчизняних та зарубiжних [ ] дослiдникiв,
кiлькiснi та якiснi характеристики глiкоалкалоїдiв нових сортiв i гiбридiв
картоплi заслуговують на поглиблене вивчення. Одним з найважливіших питань,
пов’язаних з біохімією та фізіологією глікоалкалоїдів, яке і досі не знайшло
однозначного вирішення, є встановлення корелятивних зв’язків між параметрами
метаболізму глікоалкалоїдів та ступенем стійкості сортів картоплі проти
шкідників і фітопатогенів [ ]. Іншим дискусійним питанням є
невизначеність зв’язків між кількісним накопиченням глікоалкалоїдів в
тканинах рослин картоплі різних сортів, зокрема бульбах і умовами вирощування
(погодно-кліматичні умови протягом конкретного вегетаційного сезону, тип
грунтів, удобрення тощо), а також умовами зберігання (температура,
освітленість, вологість тощо)[ ]. На думку провідних вчених дискусійні та
суперечливі результати в цьому напрямку дослідження отримані тому, що, по-
перше, на інтенсивність біосинтезу вторинних метаболітів взагалі і
глікоалкалоїдів зокрема, різноспрямовано впливає велика кількість факторів
зовнішнього середовища і це, разом з підвищеною лабільністю та чутливістю
ферментних систем метаболізму глікоалкалоїдів до зазначених факторів
обумовлює суттєві розбіжності, про які згадувалось вище; і, по-друге,
більшість ранніх робіт були проведені без урахування різноманітності
глікоалкалоїдів за хімічною структурою – в межах цих досліджень визначали
тільки їх сумарну кількість ваговим або колориметричним методами [ ].
Проте, глікоалкалоїди картоплі являють собою досить велику групу сполук, до
складу якої входять «мажорні» (a-соланiн та a-чаконiн у культурних видів
картоплі) і численні «мінорні» (b-соламарін, деміссидін, 5b-соланідан-3a-ол,
томатіденол) компоненти. Крім того, тканини рослин картоплі містять
спеціалізовані ферментні системи, які модифікують інтактні молекули
глікоалкалоїдів з утворенням численних проміжних сполук, фізіологічна роль яких
вичерпно не з’ясована (b-соланін, b-чаконін, g-соланін, g-чаконін тощо)[ ].
Таким чином, дослідження статичних і динамічних кількісних та якісних
параметрів глікоалкалоїдів рослин картоплі різних сортів в процесах вирощування
в умовах конкретних кліматичних зон, зберігання та переробки, а також під
впливом фітопатогенів, мають певні перспективи за умов використання з метою
аналізу цих сполук нових високоінформативних фізико-хімічних методів досліджень
[ ]. В Сумському ДАУ та Інституті прикладної фізики НАНУ (м.Суми) в
1994-2000 рр. в межах проекту «М’якоіонізаційна мас-спектрометрія в
агробіології» провели цикл досліджень глiкоалкалоїдів рослин картоплi за
допомогою новiтнього фiзико-хiмiчного методу аналізу полярних, термолабільних,
нелетючих органiчних сполук – плазмено-десорбційної часопрольотної
плазмено-десорбцiйної мас-спектрометрiї з iонiзацiєю уламками подiлу 252
Cf (МС-ПДМС)[ ].
Алкалоїди являють собой велику групу рослинних речовин різного хімічного
складу, яким притаманна специфічна дія на організм ссавців та людини.
Алкалоїди є азотовміськими гетероциклічними сполуками, що містять в своєму
складі атом азоту. Загальною властивостю даної групи речовин є їх надзвичайно
сильна фізиологічна дія на організм тварин та людей. Більшість алкалоїдів
діють на нервову систему: в невеликих дозах здійснюють збуджуючий вплив, в
великих - пригнічують, а в ще більших є сильнодіючими отрутами [ ].
Фізіологічне значення алкалоїдів в життєдіяльності самих рослин досі не
з`ясовано. До цього часу не вдалося ще з великою достовірностю показати місце
алкалоїдів в життєво важливих процесах обміну речовин, з іншого боку немає
неспростовних доказів того, що алкалоїдоносні види рослин можуть існувати без
алкалоїдів [ ].
В ряді робіт відзначається вплив алкалоїдів на обмін речовин у рослин,
виникнення квітів, формування органел та органів рослин, ріст клітин, поділ
ядер і т.д. Було доведено, що алкалоїди в клітинах рослин якимось чином
ізольовані від внутрішнього середовища клітини. Так, розчини нікотину, нанесені
на рослинні тканини табаку, чинять всебічну негативну фітотоксичну дію навіть
при концентрації, рівній їх концентрації в тканинах. Доведено, що високий вміст
алкалоїдів часто пов`язаний зі зниженням сили росту рослин. Інакше кажучи, у
рослин в період вегетації та спокою існує тісний взаємозв`язок: «білковий
азот - алкалоїди». Цими причинами, на думку Горяєва, пояснюється зміна
складу алкалоїдів, а в деяких випадках і їх повна відсутність в тканинах
алкалоїдних рослин (Solsola richteri. Girgensonia Oppositiflora. Anabasis
turkestanika) [ ].
1.1. 1. Глікоалкалоїди рослин картоплі та їх будова.
Глікоалкалоїди, які містяться в бульбах картоплі, раніше називали загальним
терміном «соланін». В наш час встановлено, що так званий «соланін» являє
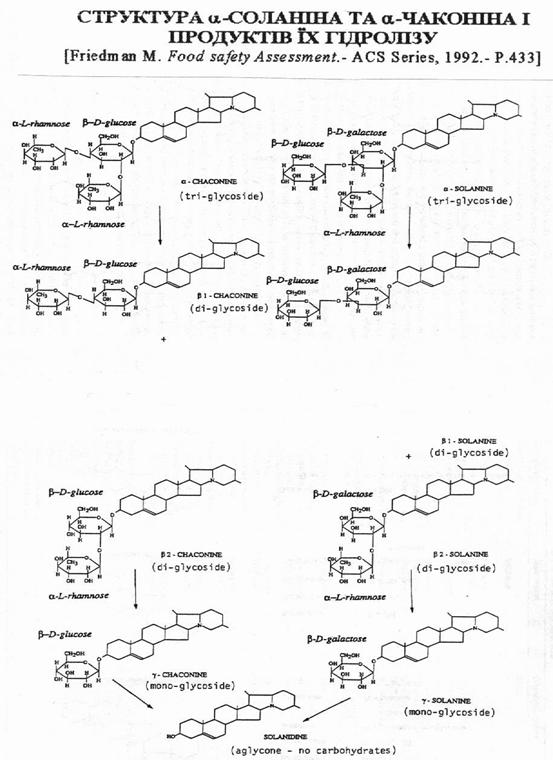
собою суміш якнайменше 6 різних глікозідних сполук: a-, b-, g-соланіна та a-
, b-, g-чаконіна. Ці сполуки мають один і той же аглікон («корове ядро») –
соланідин і відрізняються між собою складом глікозидного ланцюжка (Рис.1).
Трисахаріди - a-соланін і a-чаконін є основними формами і складають в
тканинах картоплі біля 95% усієї суми глікоалкалоїдів групи соланіна [
]. Крім a-, b-, g-соланіна та a-, b-, g-чаконіна, відомі інші глікоалкалоїди
пасльонових: солакаулін, соласолін, соламаргін, демісін, томатін, лептін,
лептінін-1, лептінін-2 та інші. Всі гликоалкалоїди складаються з двох
основних складових, виникаючих при кислотному гідролізі цих речовин –
аглікона, який і є власне «алкалоїдом», і декількох моносахарів, які
знаходяться в молекулі глікоалкалоїда в вигляді глікозідного ланцюга,
зв`язаного з агліконом [ ]. Глікоалкалоїди культурної та дікої картоплі
(Solanum) можна систематизувати в окремі групи. До групи соланідіна
відносяться: a-, b-, g-соланін та a-, b-, g-чаконін, солакаулін і
глікоалкалоїд, виділений з групи Akaulia. Іншу групу алкалоїдів складають
сполуки, агліконом яких є соласодін. Сюди входять соласонін і соламаргін.
Соласонін і соламаргін є основними алкалоїдами Solanum nigrum, Solanum
laciniatum більшості інших видів Solanum
[ ].
Соласодамін знайдений в листках Solanum auriculatum і Solanum magrinatum. В
групу, яка містить в якості аглікона демісідін, входить демісин, знайдений у
Solanum demissum і глікоалкалоїд, виділений із Solanum polyadenium. Лептіни –
глікоалкалоїди,
Рис.1. Хімічна структура агліконів, знайдених в рослинах картоплі [ ].
знайдені Куном і Левом, виявлені у Solanum chacoense. Групи Eutuberosa,
Andigena, і Commersonia містять тільки - соланін, ці види містять також
чаконін. Ці два глікоалкалоїди зустрічаються завжди разом, що доведено
хроматографічними дослідженнями. Демісин присутній в рослинах групи Demissa і
Acaulia, за виключенням Solanum acaulia, в складі якого знайдено солакаулін.
Демісин знайдений також у Solanum jamesii. У форм, які не дають бульб, крім
a-соланіна, який і тут частіше всього зустрічається, найбільшу групу
складають форми, які містять томатін. І тільки єдина форма Solanum
poliadenium, яка створює бульби, містить томатін. Інші алкалоїди
зустрічаються тільки в деяких форм, нприклад, соласодамін – у Solanum
sodomaneum i Slanum aviculare.
Всі алкалоїди картоплі належать до стероїдної групи похідних
циклопентанопергідрофенантрена і складаються з алкалоїда (аглікона) та цукру,
зв’язаного з ним глікозідним зв’язком. Аглікон має стероїдну будову, містить
атоми азоту, який утворює третинну або вторинну аміногрупу. Прикладом першого
типу являється соланідін, другого-томатідін і соласодін. Глікозідна частина
являє собою моно-, ді-, три-, і тетрасахаріди; до їх складу може входити
глюкоза (Glu), галактоза (Gal), рамноза (Rha) і ксілоза (Xyl). Наприклад,
a-соланін складається з аглікона-соланідіна і трисахаріда, який при гідролізі
кислотою розпадається на галактозу, глюкозу і рамнозу. Соланін має
розгалужений сахарний ланцюжок: безпосередньо з агліконом зв`язана галактоза,
а глюкоза і рамноза складають бокові ланцюги. Подібну будову мають глікозідні
частини глікоалкалоїдів демісіну, томатіну, a-чаконіну, соласодіну і
соламаргіну [ ].
Під впливом гідролізу глікоалкалоїди розпадаються на цукор і аглікон, фізичні
і хімічні властивості якого і вказують на велику схожість його зі стероїдами.
Стероїди утворюють різноманітну групу важливих природних речовин. Сюди
відносяться стеріни, жовчні кислоти, гормони розмноження, вітаміни групи Д,
глікозиди, різні алкалоїди і інші речовини. Базовою структурою усіх стероїдів
є стеран (циклопентанопергідрофенантрен).
До класу стероїдів належать також фітостерини: сіто-, стігма-, і кампестерін,
холестерін, ергостерін, жовчні кислоти.
Сполуки стероїдів з сахаром належать до групи глікозідів. В цю групу, крім
глікоалкалоідів, входять «сердечні глікозіди», які містяться в деяких
рослинах із родини Strophanthus і Digitalis. Стероїдні саконіни також являють
собою глікозіди агліконів, котрі э похідними циклопентанопергідрофенантрена.
Сапоніни не містять в своєму складі атом азоту [ ].
Одним з доказів схожості аглікона глікоалкалоідів зі стероїдами є те, що їх
можливо перетворити в метилциклофенантрен. Ця сполука синтезується тим же
шляхом із стероїдів. При третьому атомі вуглецю аглікона знаходиться група,
яка може сполучатися глікозідно з моносахаридами. Остаточно стероїдну будову
аглікона вдалося довести, коли похідне аглікона отримали з відомих стероїдів
і, навпаки, похідні стероїдів- із аглікона глікоалкалоїдів; наприклад, із
безазотної речовини криптогеніна - соласодін, із соласодіна - стероїдний
сапогенін - діосгенін. Веліка схожість з сапонінами виявляється і в будові
сахарної частини глікоалкалоідів. Загальною властивістю сапонинів і
глікоалкалоідів являється їх гемолітична дія [ ].
Таким чином, основними глікоалкалоїдами культурної картоплі є a- соланін та
a-чаконін. Всі глікоалкалоїди різних видів картоплі складаються з двох
основних частин: аглікона (алкалоїда), який має стероїдну будову, і молекули
сахару, в склад якої входять моно-, ді-, три-, або тетрасахариди.
1.1.2. Глікоалкалоїди як токсичні сполуки
Глікоалкалоїди соланін та чаконін в невеликій кількості розглядається як
цілком можливі компоненти бульб картоплі, при надмірній кількості вони
погіршують смакові якості картоплі. У бульб з`являється гіркуватий смак, при
вживанні таких бульб в харчування віникають чуття зуду в горлянці [ ].
Встановлена визначена кореляція між наявністю глікоалкалоїдів і
органолептичними смаковими якостями вареної картоплі. При дуже низькому
вмісті глікоалкалоїдів в бульбах (порядку 1-5 мг%) смак вареної картоплі
трохи гірший, ніж при середньому (5-10 мг%). Але збільшення їх вмісту вище за
26 мг% на сиру речовину дуже погіршує смак вареної картоплі і стає
небезпечним для здоров`я людини [ ].
Бульби картоплі, які містять ніж 20 мг% глікоалкалоїдів, не рекомендується
вживати в харчування, осбливо коли картопля вареться зі шкірочкою. Почищені
бульби менш небезпечні, так як значна частина глікоалкалоїдів видаляється зі
шкірочкою, а частина переходить в воду, при варинні ж неочищених бульб цього
не відбувається вз`язку з слабкою проникністю шкірочки. За даними
М.Г.Шевченко [ ], нйбільшу небезпеку для здоров`я становить нерозчинний в
воді соланін, зосереджений в основі пророслх вічок.
1.1.3. Роль глікоалкалоїдів в явищі імунітета до бактеріальних, грибкових
захворювань і шкідників та їх значення в селекції нових сортів картоплі.
Глікоалкалоїди привертають увагу селекціонерів-картоплярів в зв`язку з їх
токсичною дією на бактеріальні та грибкові захворювання картоплі, а також в
зв`язку з токсичною дією на колорадського жука [ ].
Встановлено, що соланін затримує ріст бактерій, а 0,1-0,5% -ний розчин його
викликає відмирання протоплазми. Виділені фунгіцидні якості глікоалкалоїдів в
відношенні ряду патогенних грибів, таких як Microsporum audoine,
Trichophyton gypseum, Fusarium oxуsporum, зооспор Phytophthora infestans,
Helminthosporum carbonum.
В Інституті біохімії РАН досліджували фунгіцидні властивості глікоалкалоїдів
і інших сполук картоплі, наділених антибіотичними якостями, а також вивчали
дію механічних пошкоджень і зараження Phytophtora infestans на утворення і
розподіл глікоалкалоїдів в тканинах бульб [ ]. Виявилось, що
глікоалкалоїдам a-соланіну та a-чаконіну притаманна більша фунгіцидна
активність ніж фенолам (кофейній і хлорогеновій кислотам). Так, в
концентрації 0,1 мг/мл останні не впливали на кінетичні показники росту
фітофтори, тоді як глікоалкалоїди пригнічували його майже на 70%. Зооспори
цього паразита гинули вже при концентрації a-соланіна 5 мкг/мл.
Соланин, чаконін і соланідін інгібують радіальний рост Alternaria solani на
картоплі. По ступеню інгібування на першому місці стоїть соладінін, потім
чаконін і соланін. При концентрації 500 мг/л соланін викликає 50% інгібування
росту після 96-годинного періоду інкубації при 24оС. Встановлено
наявність збільшення чутливості листків до розвітку пошкодження яке
супроводжується зменшенням концентрації глікоалкалоїдів в листках в міру їх
старіння. Наприклад, 30-денні листки сорту Катадин містять 950 мг/кг
глікоалкалоїдів і стійкі до паразиту, тоді як старіючі 90-денні листки містять
тільки 150мг/кг глікоалкалоїдів і значно уражаються грибом [ ].
Проте подальші дослідження показали, що хоча глікоалкалоїди і наділені
фунгітоксичністю, вони все ж таки не є вирішальним фактором в явищі
фітоімунітета картоплі [ ]. Взагалі після інфікування в бульбах картоплі
накопичується хлогенова та кофейна кислоти, скополетин, a-соланін, a-чаконін,
рішитин, фітуберин. Всі зазначені сполуки, за виключенням рішитіна та
фітуберіна, присутні в шкірочці бульби в кількостях рівних або більших, аніж
синтезованих за умов інфікування патогеном очищеної картоплі. Хлорогенова та
кофейна кислоти знайдені в усіх частинах рослини. Вони продукуються в
бульбах картоплі в результаті пошкоджень та інфекції багатьма патогенними та
не патогенними організмами і накопичуються (або присутні) в деяких здорових
тканинах рослини картоплі в кількостях, які можуть пригнічувати
мікроорганізми. Механічне пошкодження чи інфекція викликає швидке окислення
цих речовин, а продукти окислення токсичні для багатьох мікроорганізмів. На
ранніх стадіях інфекції після інокуляції бульб деякими расами фітофтори
накопичуються поліфеноли. В тканинах, інокульованих несумісними расами
фітофтори, або в зрізах накопичується тільки хлорогенова кислота.
Глікоалкалоїди a-соланін і a-чаконін зосереджуються біля пошкоджених ділянок
бульби [ ]. Про те, що глікоалкалоїди не є вирішальним фактором в
імунітеті картоплі, свідчать результати дослідів, проведених на раневій
перидермі бульб. В зараженій фітофторою раневій тканині картоплі
глікоалкалоїди не накопичуються. Звідси виходить припущення, що фітофтора
наділена здатністю руйнувати глікоалкалоїди.
В раневій тканині, зараженій несумісною расою фітофтори, не відбувається
накопичення глікоалкалоїдів, не виявляються фітоaлексини рішитин і любімін. В
непошкодженій паренхимі бульб не синтезуються ні глікоалкалоїди, ані
фітоалексіни. В раневій перидермі весь мевалонат використовується на синтез
глікоалкалоїдів. В відмерлій тканині, навпаки. Утворення глікоалкалоїдів
майже не відбувається, а мевалонат використовується для синтезу рішитіна та
любіміна. В зараженій тканині, як і в раневій, глікоалкалоїди хоча і
утворюються, але розкладаються фітофторою [ ].
В США проводили роботи по виведенню сортів картоплі, наділених полігенною
стікістю до фітофтори, при цьому стикалися з труднощами, обумовленими
отриманням гібридів з високим вмістом в бульбах глікоалкалоїдів. Дослідження,
проведені в селекційному центрі штата Західна Віргінія, на 15 клонах
картоплі, наділених різною ступеню полігенної стійкості до фітофтори і трьох
стандартних сортах, не підтвердили наявність взаємозв`язку між зазначеною
стійкістю і вмістом в бульбах глікоалкалоїдів. В результаті прийшли до
висновку, що можливе створення нових сортів картоплі з полігенною стійкістю
до фітофтори і звичайним, або зниженим вмістом глікоалкалоїдів в бульбах.
Встановлена висока ступінь кореляції (r=0,82) між вмістом глікоалкалоїдів в
листках та бульбах випробуваного селекційного матеріалу [ ].
Дослідженнями Куна було встановлено, що непоїдання листків дикого виду
картоплі Solanum demissum колорадським жуком обумовлена наявністю в них
глікоалкалоїда демісіна [ ]. Це спонукало вітчизняних ботаніків
організувати експедицію в країни Південної Америки для пошуків диких видів
картоплі, стійких до колорадського жука. Під час експедиції було знайдено
біля 10 таких видів, частина з них використовується в селекції при виведенні
нових сортів картоплі.
Глікоалкалоїди бульбоносних виді |